維基百科談酵素
��,又稱為酵素,是指具有催化功能的蛋白質。[1]在�〞熄吨々狨傅擉t中,反應物分子被稱為受質,受質通過�〞熄吨ぞ鄐え陞t一種分子。幾乎所有的細胞活動進程都需要�〞滌捋P,以提高效率。與其他非生物催化劑相似,�○q過降低化學反應的活化能(用Ea或ΔG�猼磳隉^來加快反應速率,大多數的�‘i以將其催化的反應之速率提高上百萬倍;同樣,�“@為催化劑,本身在反應過程中不被消耗,也不影響反應的化學平衡。與其他非生物催化劑不同的是,�”膃陸物蛌滷M一性,只催化特定的反應或產生特定的構型。目前已知的可以被�▲吨う漱狨釵閉�4000種。[2]
雖然�′O蛋白質,但並非具有生物催化功能的分子都是蛋白質,有一些被稱為核��的RNA分子同樣具有催化功能。[3]此外,通過人工合成所謂人工��也具有與� ̄�似的催化活性。[4]有人認為�㊣釧w義為具有催化功能的生物大分子,即生物催化劑,則該定義中�‘]含具有催化功能的蛋白質和核��。[5]
�〞熄吨え〝吤i以受其他分子影響:抑制劑是可以降低�′〝坁漱壑l;活化劑則是可以增加�′〝坁漱壑l。有許多藥物和毒藥就是�〞漣磻蹌砥C�〞漪〝岏晱i以被溫度、化學環境(如pH值)、受質濃度以及電磁波(如微波[6])等許多因素所影響。
�’b工業和人們的日常生活中的應用也非常廣泛。例如,藥廠用特定的合成�”茼X成抗生素;加��洗衣粉通過分解蛋白質和脂肪來幫助除去衣物上的污漬和油漬。
發現及研究史
�〞熊o現來源於人們對發酵機理的逐漸了解。早在18世紀末和19世紀初,人們就認識到食物在胃中被消化,[7]用植物的提取液可以將澱粉轉化為糖,但對於其對應的機理則並不了解。[8]
到了19世紀中葉,法國科學家路易·巴斯德對蔗糖轉化為酒精的發酵過程進行了研究,認為在酵母細胞中存在一種活力物質,命名為「酵素」(ferment)。他提出發酵是這種活力物質催化的結果,並認為活力物質只存在於生命體中,細胞破裂就會失去發酵作用。[9]
1878年,德國生理學家威廉·屈內首次提出了��(enzyme)這一概念。隨後,��被用於專指胃蛋白��等一類非活體物質,而酵素(ferment)則被用於指由活體細胞產生的催化活性。
這種對�〞瑪欞~認識很快得到糾正。1897年,德國科學家愛德華·比希納開始對不含細胞的酵母提取液進行發酵研究,通過在柏林洪堡大學所做的一系列實驗最終證明發酵過程並不需要完整的活細胞存在。[10]他將其中能夠發揮發酵作用的�〝R名為發酵��(zymase)。[11]這一貢獻打開了通向現代�▽�與現代生物化學的大門,其本人也因「發現無細胞發酵及相應的生化研究」而獲得了1907年的諾貝爾化學獎。在此之後,�〝M酵素兩個概念合二為一,並依據比希納的命名方法,�〞熊o現者們根據其所催化的反應將它們命名。通常�〞滬^文名稱是在催化受質或者反應類型的名字最後加上-ase的後綴,而對應中文命名也採用類似方法,即在名字最後加上「�﹛v。例如,乳糖��(lactase)是能夠剪切乳糖(lactose)的�﹛FDNA聚合��(DNA polymerase)能夠催化DNA聚合反應。
人們在認識到�′O一類不依賴於活體細胞的物質後,下一步工作就是鑒定其生化組成成分。許多早期研究者指出,一些蛋白質與�〞熄吨え〝坌袺騿F但包括諾貝爾獎得主里夏德·維爾施泰特在內的部分科學家認為�﹞ㄛO蛋白質,他們辯稱那些蛋白質只是�﹞壑l的攜帶者,蛋白質本身並不具有催化活性。1926年,美國生物化學家詹姆斯·薩姆納完成了一個決定性的實驗。他首次從刀豆得到尿素��結晶,並證明了尿素�〞�蛋白質本質。其後,薩姆納在1931年在過氧化氫��的研究中再次證實了�′偃J白質。約翰·霍華德·諾思羅普和溫德爾·梅雷迪思·斯坦利通過對胃蛋白�﹛B胰蛋白��和胰凝乳蛋白��等消化性蛋白��的研究,最終確認蛋白質可以是�﹛C以後陸續發現的兩千余種�“ ̄狻��〞漱ずル遢雓O蛋白質。以上三位科學家因此獲得1946年度諾貝爾化學獎。[12]
由於蛋白質可以結晶,通過X射線晶體學就可以對�〞漱T維結構進行研究。第一個獲得結構解析的�﹞壑l是溶菌��,一種在眼淚、唾液和蛋清中含量豐富的�﹛A其功能是溶解細菌外殼。溶菌��結構由大衛·菲利浦(David Phillips)所領導的研究組解析,並於1965年發表。[13]這一成果的發表標志著結構生物學研究的開始,高解析度的�﹞T維結構使得對於�’b分子水平上的工作機制的了解成為可能。
1980年代,托馬斯·切赫(Thomas Cech)和雪梨·奧爾特曼分別從四膜蟲的rRNA前體的加工研究和細菌的核糖核酸�·複合物的研究中都發現RNA本身具有自我催化作用,並提出了核��的概念。這是第一次發現蛋白質以外的具有催化活性的生物分子。 1989年,其二人也因此獲得諾貝爾化學獎。[14]
[編輯] 生物學功能
在生物體內,�△o揮著非常廣泛的功能。信號轉導和細胞活動的調控都離不開�﹛A特別是激��和磷酸��的參與。[15]�﹞]能產生運動,通過催化肌球蛋白上ATP的水解產生肌肉收縮,並且能夠作為細胞骨架的一部分參與運送胞內物質。[16]一些位於細胞膜上的ATP��作為離子泵參與主動運輸。一些生物體中比較奇特的功能也有�〞滌捋P,例如熒光素��可以為螢火蟲發光。[17]病毒中也含有�﹛A或參與侵染細胞(如HIV整合��和逆轉錄��),或參與病毒顆粒從宿主細胞的釋放(如流感病毒的神經胺酸��)。
�〞漱@個非常重要的功能是參與在動物消化系統的工作。以澱粉��和蛋白��為代表的一些�‘i以將進入消化道的大分子(澱粉和蛋白質)降解為小分子,以便於腸道吸收。澱粉不能被腸道直接吸收,而�‘i以將澱粉水解為麥芽糖或更進一步水解為葡萄糖等腸道可以吸收的小分子。不同的�﹞戲悀ㄕP的食物受質。在草食性反芻動物的消化系統中存在一些可以產生纖維素��的細菌,纖維素�‘i以分解植物細胞壁中的纖維素,從而提供可被吸收的養料。
在代謝途徑中, 多個�‘H特定的順序發揮功能:前一個�〞熔ㄙ型O後一個�〞漕�質;每個�▲吨々狨釩寣A產物被傳遞到另一個�﹛C有些情況下,不同的�‘i以平行地催化同一個反 應,從而允許進行更為複雜的調控:比如一個�‘i以以較低的活性持續地催化該反應,而另一個�’b被誘導後可以較高的活性進行催化。�〞漲s在確定了整個代謝按 正確的途徑進行;而一旦沒有�〞漲s在,代謝既不能按所需步驟進行,也無法以足夠的速度完成合成以滿足細胞的需要。實際上如果沒有�﹛A代謝途徑,如糖酵解,無法獨立進行。例如,葡萄糖可以直接與ATP反應使得其一個或多個碳原子被磷酸化;在沒有�〞熄吨お氶A這個反應進行得非常緩慢以致可以忽略;而一旦加入六碳糖激��,在6位上的碳原子的磷酸化反應獲得極大加速,雖然其他碳原子的磷酸化反應也在緩慢進行,但在一段時間後檢測可以發現,絕大多數產物為葡萄糖-6-磷酸。於是每個細胞就可以通過這樣一套功能性�”荍髡言N謝途徑的整個反應網路。
[編輯] 結構與催化機理
作為蛋白質,不同種�﹞孜〞漱j小差別非常大,從62個胺基酸殘基的4-草醯巴豆酯互變異構��(4-oxalocrotonate tautomerase)[18]到超過2500個殘基的動物脂肪酸合成��[19]。�〞�三維結構決定了它們的催化活性和機理。[20]大多數的�○ㄜn比它們的催化受質大得多,並且�﹞壑l中只有一小部分(3-4個殘基)直接參与催化反應。[21]這些參與催化殘基加上參與結合受質的殘基共同形成了發生催化反應的區域,這一區域就被稱為「活性中心」或「活性位點」。有許多�“t有能夠結合其催化反應所必需的輔因子的結合區域。此外,還有一些�*鈰鰽畢X催化反應的直接或間接產物或者受質;這種結合能夠增加或降低�′﹛A是一種反饋調節手段。
[編輯] 結構
與其他非�○J白相似,�*鈰�摺疊形成多種三維結構類型。有一部分�′O由多個亞基所組成的複合物�﹛C除了嗜熱菌中的�‘H外,大多數�’b高溫情況下會發生去摺疊,其三維結構和�′〝妘Q破壞;對於不同的�﹛A這種去摺疊的可逆性也有所不同。
[編輯] 專一性

三種�▲吨ず魖蹓狾★洁GA. 「鎖-鑰匙」模式;B. 誘導契合模式; C. 群體移動模式。
通常情況下,�★鴭顙銎珔吨う漱狨傢�型和受質種類具有高度的專一性。�〞漪〝呇嚍I和受質,它們的形狀、表面電荷、親疏水性都會影響專一性。�〞熄吨ぁi以具有很高的立體專一性、區域選擇性和化學選擇性(chemoselectivity)。[22] 具體來說,�‘u對具有特定空間結構的某種或某類受質起作用。例如,麥芽糖��只能使α-葡萄糖��鍵斷裂而對β-葡萄糖��鍵無影響。此外,�”膃章翵�質對映異構體的識別能力,只能於一種對映體作用,而對另一對映體不起作用。例如,胰蛋白��只能水解由L-胺基酸形成的�汐�,而不能作用於D-胺基酸形成的�汐銦F酵母中的�‘u能對D-構型糖(如D-葡萄糖)發酵,而對L-構型無效。
不同�﹞孜〞滷M一性差別很大。一些�*鈰鱁捋P需要有極高準確度的基因組複製和表達中,這些�○ㄗ膃部u校對」機制。以DNA聚合��為例,它能夠先完成催化反應,然後再檢測產物是否正確。[23]這樣一種帶有校對的合成機制,使得具有高保真度的哺乳動物聚合�〞漸郁‘X錯幾率低於一百萬分之一,即完成一百萬個反應,出現產物錯誤的反應不到一個。[24]在RNA聚合��[25]、氨醯tRNA合成��[26] 和核糖體[27]中也發現了類似的校對機制。而對於另一些參與合成次生代謝產物(secondary metabolite)的�﹛A它們能夠與相對較廣的不同受質作用。有人認為這種低專一性可能對於新的生物合成途徑的進化十分重要。[28]
為了解釋�〞滷M一性,研究者提出了多種可能的�◆P受質的結合模式(後兩種模式為大多數研究者所傾向):
[編輯] 「鎖-鑰匙」模式(「Lock and key」)
該模式由赫爾曼·埃米爾·費歇爾于1894年提出,基於的理論是�〝M受質都有一定的外形,若且唯若兩者之間的外形能夠精確互補時,催化反應才可以發生。[29]這一模式通常被形象地稱為「鎖-鑰匙」模式。雖然這一模式能夠解釋�〞滷M一性,但卻無法說明為什麼�*鈰鷖酋w反應的過渡態。
[編輯] 誘導契合模式(Induced fit)

六碳糖激��在結合 葡萄糖分子前後所發生的結構變化。左邊為結合葡萄糖分子前,箭頭所指為活性位點;右邊為結合後。
該模式由丹尼爾·科什蘭(Daniel Koshland)通過修改「鎖-鑰匙」模式,于1958年提出。基於的理論是,既然�“@為蛋白質,其結構是具有一定柔性的,因此活性位點在結合受質的過程中,通過與受質分子之間的相互作用,可以不斷發生微小的形變。[30]在這一模式中,受質不是簡單地結合到剛性的活性位點上,活性位點上的胺基酸殘基的側鏈可以擺動到正確的位置,使得�*鈰鰶i行催化反應。在結合過程中,活性位點不斷地發生變化,直到受質完全結合,此時活性位點的形狀和帶電情況才會最終確定下來。[31]在一些情況下,受質在進入活性中心時也是會發生微小形變的,如糖����的催化反應。[32]
[編輯] 群體移動模式(Population shift)
這一模式是近年來提出的一種新的�◆P受質的結合模式,[33]試 圖解釋在一些�﹞予珛o現的受質結合前後,�〞犖c象有較大變化,而這是用誘導契合模式無法解釋的。其基於的假設是,�’b溶液中同時存在不同構象,一種構象 (構象A)為適合受質結合的構象,而另一種(構象B)則不適合,這兩種構象之間保持著動態平衡。在沒有受質存在的情況下,構象B佔主導地位;當加入受質 後,隨著受質不斷與構象A結合,溶液中構象A含量下降,兩種構象之間的平衡被打破,導致構象B不斷地轉化為構象A。
[編輯] 機理
�▲吨ず鰷z多種多樣,殊途同歸的是最終都能夠降低反應的ΔG�煄G[34]
- 創造穩定過渡態的微環境。例如,通過與反應的過渡態分子更高的親和力(與受質分子相比),提高其穩定性;或扭曲受質分子,以使得受質更趨向于轉化為過渡態。
- 提供不同的反應途徑。例如,暫時性地激活受質,形成��-受質複合物的中間態。
- 將反應中不同受質分子結合到一起,並固定其方位至反應能夠正確發生的位置,從而降低反應的「門檻」。如果只考慮反應的焓變(ΔH�煄^,則此作用會被忽略。有趣的是,這一作用同時也會降低反應基態的穩定性,[35]因此對於催化的貢獻較小。[36]
[編輯] 過渡態的穩定
對比同一反應在不受催化和受�▲吨う滷〞p,可以了解�′O如何穩定過渡態的。最有效的穩定方式是電荷相互作用,�‘i以為過渡態分子上的電荷提供固定的相反電荷,[37]而這是在水溶液非催化反應體系中不存在的。
[編輯] 動態作用
最近的一些研究揭示了�﹞熙〞滌妧A作用與其催化機制之間的聯繫。[38][39]�﹞熙〞滌妧A作用可以描述為其內部組成元件(小的如一個胺基酸、一組胺基酸;大的如一段環區域、一個α螺旋或相鄰的β鏈;或者可以是整個結構域)的運動,這種運動可以發生在從飛秒(10-15秒)到秒的不同時間尺度。通過這種動態作用,整個�﹞壑l結構中的胺基酸殘基就都可以對�▲吨ぃ@用施加影響。[40][41][42][43]蛋白質動態作用在許多�﹞仇ㄟ_到關鍵作用,而是小的快速運動還是大的相對較慢的運動起作用更多是依賴於�〝珔吨う漱狨傢�型。對於動態作用的這些新發現,對於了解異位作用、設計人工�〝M開發新藥都有重要意義。
但必須指出的是,這種時間依賴的動態進程不大可能幫助提高�▲吨々狨釭熙t率,因為這種運動是隨機發生的,並且速率常數取決於到達中間態的幾率(P)(P = exp {ΔG��/RT})。[44]而且,降低ΔG�瑂搨n相對較小的運動(與在溶液反應中的相應運動相比)以達到反應物與產物之間的過渡態。因此,這種運動或者說動態作用對於催化反應有何貢獻還不清楚。
[編輯] 異位調節
-
在結合效應子的情況下,異位�*鈰鬻幭雃菬音硎c,從而達到調節�′〝坁漁釋部C這種調節作用可以是直接的,即效應子結合到異位�﹞W;也可以是間接的,即效應子通過結合其它能夠與異位�′菑洹@用的蛋白來發揮調節作用。
[編輯] 失活
一般情況下,�’b常溫、常壓和中性水溶液條件下可以正常發揮催化活性。在極端條件下,包括高溫、過高或過低pH條件等,�◎|失去催化活性,這被稱為�〞漸╱﹛C但也有一些�‵h偏好在非常條件下發揮催化功能,如嗜熱菌中的�’b高溫條件下反而具有較高活性,嗜酸菌中的�﹞S偏好低pH條件。
[編輯] 輔因子與輔��
-
[編輯] 輔因子
並非所有的�’菬韭N可以催化反應,有一些�◆搨n結合一些非蛋白小分子後才可以發揮或提高催化活性。[45]這些小分子被稱為輔因子,它們既可以是無機分子或離子(如金屬離子、鐵硫簇),也可以是有機化合物(如黃素、血紅素)。有機輔因子通常是輔基,可以與其對應的�‵D常牢固地結合。這種牢固結合的輔因子與輔�﹛]如NADH)不同的是,在整個催化反應過程中,它們一直結合在�′〝呇嚍I上而不脫落。
以含有輔因子的碳酸酐��為例:其輔因子鋅牢固地結合在活性中心,參與催化反應。[46]黃素或血紅素等輔因子可以參與催化氧化還原反應,往往結合於催化此類反應的�﹞丑C
需要輔因子結合以進行催化的�﹛A在不結合輔因子的情況下,被稱為脫輔基�○J白(apoenzyme);而在結合了輔因子後,被稱為全��(holoenzyme)。大多數全�﹞丑A輔因子都是以非共價連接方式與�△畢X;也有一些有機輔因子可以與�’@價結合(如丙酮酸脫氫��中的焦磷酸硫胺素)。
[編輯] 輔��
輔�′O一類可以將化學基團從一個�‾鉦儘鴠t一個�﹞W的有機小分子,與�☆�為鬆散地結合,對於特定�〞漪〝妗o揮是必要的。[45]有許多維他命及其衍生物,如核黃素、硫胺素和葉酸,都屬於輔�﹛C[47]這些化合物無法由人體合成,必須通過飲食補充。不同的輔�*鈰鷵漹a的化學基團也不同:NAD或NADP+攜帶氫離子,輔�,攜帶乙醯基,葉酸攜帶甲醯基,S-腺�ㄟ繷J胺酸也可攜帶甲醯基。[48]
由於輔�’b�▲吨々狨酗尹鉹ずЕ掑懇o生了變化,因此可以認為輔�′O一種特殊的受質或者稱為「第二受質」。這種所謂的第二受質可以被許多�〝狶Q用。例如,目前已知有約七百種�‘i以利用輔��NADH進行催化。[49]
在細胞內,反應後的輔�‘i以被再生,以維持其胞內濃度在一個穩定的水平上。例如,NADPH可以通過磷酸戊糖途徑和甲硫胺酸腺�ㄟ臕鉦���作用下的S-腺�ㄟ繷J胺酸來再生。由於輔�〞漲A生對於維持�﹞狨傅擉t的穩定是必要的,因此,輔�’A生系統獲得了大量的實驗室以及工業應用。[50]
[編輯] 熱力學

有�〝庰L�▲吨々狨傅擉t中反應進程與能量關係圖示。可以看出,當反應沒有�〞熄吨お氶A受質通常需要獲得較高的活化能才能到達過渡態,然後才能生成產物;而當反應體系中有�▲吨お氶A通過�★儮L渡態的穩定作用,降低了達到過渡態所需能量,從而降低了整個反應所需的能量。
與其他催化劑一樣,�”瓣ㄖ幭雂狨釭�平衡常數,而是通過降低反應的活化能來加快反應速率(見右圖)。通常情況下,反應在�’s在或不存在的兩種條件下,其反應方向是相同的,只是前者的反應速度更快一些。但必須指出的是,在�﹞ㄕs在的情況下,受質可以通過其他不受催化的「自由」反應生成不同的產物,原因是這些不同產物的形成速度更快。
�‘i以連接兩個或多個反應,因此可以用一個熱力學上更容易發生的反應去「驅動」另一個熱力學上不容易發生的反應。例如,細胞常常通過ATP被�﹞蘢悕珩ㄔ耵滲銃q來驅動其他化學反應。
�‘i以同等地催化正向反應和逆向反應,而並不改變反應自身的化學平衡。例如,碳酸酐��可以催化如下兩個互逆反應,催化哪一種反應則是依賴於反應物濃度。[51]
 (組織內;高CO2濃度下)  (肺中;低CO2濃度下)
反應式中「*」表示「碳酸酐�﹛v
當然,如果反應平衡極大地趨向于某一方向,比如釋放高能量的反應,而逆反應不可能有效的發生,則此時�★篕琱W只催化熱力學上允許的方向,而不催化其逆反應。
[編輯] 動力學
-

單一受質的�▲吨々狨鳥鰷z:�﹛]表示為「E」)結合受質(表示為「S」),並通過催化反應生成產物(表示為「P」)。
�※吨O學是研究�△畢X受質能力和催化反應速率的科學。研究者通過�﹞狨酗尷R法(enzyme assay)來獲得用於�※吨O學分析的反應速率數據。
1902年,維克多·亨利提出了�※吨O學的定量理論;[52]隨後該理論得到他人證實並擴展為米氏方程。[53]亨利最大貢獻在於其首次提出�▲吨々狨野悃漼B組成:首先,受質可逆地結合到�﹞W,形成��-受質複合物;然後,�“髡邦儮奰酗ずリ狨釭熄吨ヾA並釋放生成的產物(見左圖)。
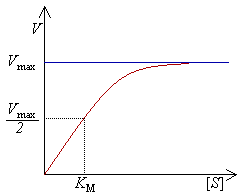
�〞鴝l反應速率(表示為「 V」)與受質濃度(表示為「[S]」)的關係曲線。隨著受質濃度不斷提高,�〞漱狨陶t率也趨向于最大反應速率(表示為「 Vmax」)。
�‘i以在一秒鐘內催化數百萬個反應。例如,乳清酸核��5'-磷酸脫羧��所催化的反應在無�§〞p下,需要七千八百萬年才能將一半的受質轉化為產物;而同樣的反應過程,如果加入這種脫羧�﹛A則需要的時間只有25毫秒。[54]�� 催化速率依賴於反應條件和受質濃度。如果反應條件中存在能夠將蛋白解鏈的因素,如高溫、極端的pH和高的鹽濃度,都會破壞�〞漪〝吽F而提高反應體系中的受 質濃度則會增加�〞漪〝吽C在�▼@度固定的情況下,隨著受質濃度的不斷升高,�▲吨う漱狨陶t率也不斷加快並趨向于最大反應速率(Vmax)(見右圖的飽和曲線)。出現這種現象的原因是,當反應體系中受質的濃度升高,越來越多自由狀態下的�﹞壑l結合受質形成��-受質複合物;當所有�﹞壑l的活性位點都被受質飽和結合,即所有�﹞壑l形成��-受質複合物時,催化的反應速率達到最大。當然,Vmax並不是�※艉@的動力學常數,要達到一定反應速率所需的受質濃度也是一個重要的動力學指標。這一動力學指標即米氏常數(Km),指的是達到Vmax值一半的反應速率所需的受質濃度(見右圖)。對於特定的受質,每一種�○ㄕ釣銡S徵Km值,表示受質與�﹞孜〞熊畢X強度(Km值越低,結合越牢固,親和力越高)。另一個重要的動力學指標是kcat,定義為一個�′〝呇嚍I在一秒鐘內催化受質的數量,用於表示�▲吨かS定受質的能力。
�〞熄吨お觸v可以用kcat/Km來衡量。這一表示式又被稱為特異性常數,其包含了催化反應中所有步驟的反應常數。由於特異性常數同時反映了�★翵�質的親和力和催化能力,因此可以用於比較不同�★鴭饈S定受質的 催化效率或同一種�★鴭韝ㄕP受質的催化效率。特異性常數的理論最大值,又稱為擴散極限,約為108至109 M-1s-1;此時,�◆P受質的每一次碰撞都會導致受質被催化,因此產物的生成速率不再為反應速率所主導,而分子的擴散速率起到了決定性作用。�〞熙o種特性被稱為「催化完美性」或「動力學完美性」。相關的�〞漕狺l有磷酸丙糖異構��、碳酸酐��、乙醯膽鹼酯��、過氧化氫��、延胡索酸��、β-內醯胺�〝M超氧化物歧化��。
米氏方程是基於質量作用定律而確立的,而該定律則基於自由擴散和熱動力學驅動的碰撞這些假定。然而,由於��/受質/產物的高濃度和相分離或者一維/二維分子運動,許多生化或細胞進程明顯偏離質量作用定律的假定。[55]在這些情況下,可以應用分形米氏方程。[56][57][58][59]
?
存在一些�﹛A它們的催化產物動力學速率甚至高於分子擴散速率,這種現象無法用目 前公認的理論來解釋。有多種理論模型被提出來解釋這類現象。其中,部 分情況可以用�★翵�質的附加效應來解釋,即一些�○Q認為可以通過雙偶極電場來捕捉受質以及將受質以正確方位擺放到催化活性位點。另一種理論模型引入了基於 量子理論的
穿隧效應,即質子或電子可以穿過激活能壘(就如同穿過隧道一般),但關於穿隧效應還有較多爭議。[60][61]有報導發現色胺中質子存在量子穿隧效應。[62]因此,有研究者相信在�▲吨々中]存在著穿隧效應,可以直接穿過反應能壘,而不是像傳統理論模型的方式通過降低能壘達到催化效果。有相關的實驗報導提出在一種醇脫氫��的催化反應中存在穿隧效應,[63]但穿隧效應是否在�▲吨々狨酗仍飪M存在並未有定論。[64]
[編輯] 抑制作用
-
�〞熄吨え〝吤i以被多種抑制劑所降低。

不同的抑制類型。分類參考自 [65]。圖中,「E」表示�﹛F「I」表示抑制劑;「S」表示受質;「P」表示產物。
[編輯] 可逆抑制作用
可逆抑制作用的類型有多種,它們的共同特點在於抑制劑對�′〝坁漣磻謅狨釣膃野i逆性。
[編輯] 競爭性抑制作用
抑制劑與受質競爭結合�〞漪〝呇嚍I(抑制劑和受質不能同時結合到活性位點)。對於競爭性抑制作用,催化反應的最大反應速率值沒有變,但是需要更高的受質濃度,反映在表觀Km值的增加。
[編輯] 非競爭性抑制作用
非競爭性抑制抑制劑可以與受質同時結合到�﹞W,即抑制劑不結合到活性位點。��-抑制劑複合物(EI)或��-抑制劑-受質複合物(EIS)都沒有催化活性。與競爭性抑制作用相比,非競爭性抑制作用不能通過提高受質濃度來達到所需反應速度,即表觀最大反應速率Vmax的值變小;而同時,由於抑制劑不影響受質與�〞熊畢X,因此Km值保持不變。
[編輯] 反競爭性抑制作用
反競爭性抑制作用比較少見:抑制劑不能與處於自由狀態下的�△畢X,而只能和��-受質複合物(ES)結合,在�﹞狨陸吨O學上表現為Vmax和Km值都變小。這種抑制作用可能發生在多亞基�﹞丑C
[編輯] 複合抑制作用
這種抑制作用與非競爭性抑制作用比較相似,區別在於EIS複合物殘留有部分�〞漪〝吽C在許多生物體中,這類抑制劑可以作為負反饋機制的 組成部分。若一個�ˍ擉t生產了過多的產物,那麼產物就會抑制合成該產物的�ˍ擉t中第一個�〞漪〝吽A這就可以保證一旦合成足夠多的產物後,該產物的合成速率 會下降或停止。受這種抑制作用調控的�○q常為多亞基�﹛A並具有與調控產物結合的異位結合位點。這種抑制作用的反應速率與受質濃度的關係圖不再是雙曲線形而 是S形。
[編輯] 不可逆抑制作用
不可逆抑制劑可以與�△畢X形成共價連接,而其他抑制作用中�◆P抑制劑之間都是非共價結合。這種抑制作用是不可逆的,�﹞@旦被抑制後就無法再恢復活性狀態。這類抑制劑包括二氟甲基鳥胺酸(一種可用於治療寄生蟲導致的昏睡症的藥物[66])、苯甲基磺醯氟(PMSF)、青霉素和阿司匹林。這些藥物都是與�′〝呇嚍I結合併被激活,然後與活性位點處的一個或多個胺基酸殘基發生不可逆的反應形成共價連接。
[編輯] 抑制劑的用途
�“磻蹌秧`被用作藥物,同樣也可以被作為毒藥使用。而藥物和毒藥之間的差別通常非常小,大多數的藥物都有一定程度的毒性,正如帕拉塞爾蘇斯所言:「所有東西都有毒,沒有什麼是無毒的」(「In all things there is a poison, and there is nothing without a poison」)。[67]相同的,抗生素和其他抗感染藥物只是特異性地對病原體而不是對宿主有毒性。
一個獲得廣泛應用的抑制劑藥物是阿司匹林,它可以抑制環加氧��的活性,而環加氧�‘i以生產炎症反應信使前列腺素,因此,阿司匹林可以起到抑制疼痛與炎症的作用。而劇毒毒藥氰化物可以通過結合細胞色素氧化��位點處的銅和鐵原子不可逆地抑制�′〝吽A從而抑制細胞的呼吸作用。[68]
[編輯] 活性控制

由兩個亞基組成的 流感病毒表面蛋白 紅血球凝集素分子的三維結構圖及其與細胞膜結合示意圖。顯示為藍色的亞基可以特異性地結合人體細胞表面的糖鏈;在病毒結合到細胞後,顯示為橙色的亞基可以啟動侵染程序。
細胞內有五種控制�▲吨え〝坁瑣魖謘G
- 根據外界環境的變化,細胞可以增強或減弱�〞漸芠�(即�′袺�基因的轉錄和轉譯)。這屬於一種基因調控,被稱為�〞獄冗肊M抑制。例如,當環境中出現如青霉素這樣的抗生素時,部分細菌可以對抗生素產生抗性,其原因就在於細菌體內的β-半乳糖����被誘導而大量生產,這種�‘i以水解青霉素分子上關鍵的β-乳胺環。另一個例子是在人體肝臟中存在一類�★鴭�藥物代謝非常重要的�﹛A細胞色素P450氧化��;對這一類�〞獄冗肊峓磻謘A會導致藥物相互作用。
- 通過在不同的細胞組分中進行不同的代謝途徑,�‘i以被分隔。例如,脂肪酸的合成是由細胞溶質、內質網和高爾基體中的一系列�〝狶髡芋A而脂肪酸的降解(以提供能量)是在粒線體中由另一系列�○q過β-氧化來完成。[69]
- �‘i以被抑制劑與活化劑所調控。例如,一個代謝途徑中的終產物常常是這一途徑中第一個�〞漣磻蹌砥A從而調控這一代謝途徑的產物量。這種調控機制被稱為負反饋機制,因為終產物的合成量是受其自身濃度調控。負反饋機制可以根據細胞的需要,有效地調節中間代謝物的合成速率,從而使細胞的能量和物質的分配更為高效,並防止多餘產物的合成。控制�〞漣@用,可以在生物體內維持一個穩定的內部環境(即體內平衡)。
- 轉譯後修飾也可以調控�〞漪〝吽C這些修飾包括磷酸化、肉豆蔻酸化和糖基化。例如,細胞接受胰島素信號後,對包括糖原合成��在內的多個�▲i行磷酸化,幫助控制糖原的合成或降解,使得細胞可以對血糖的變化產生反應。[70]另一個轉譯後修飾的例子是多�污鴘滌聾薄C胰凝乳蛋白��,一種消化性蛋白��,是產生於胰臟中的無活性的胰凝乳蛋白�#�,這一蛋白通過運輸到達胃後才被激活。這種方式有效地防止了胰凝乳蛋白�’b進入腸之前消化胰臟或其他組織。這種無活性的�〞澈e體被命名為�#�。
- 還有一些�‘i以通過定位到不同環境後而被激活,比如從還原態的環境(細胞質)到氧化態環境(細胞周質空間),從高pH環境到低pH環境等。流感病毒的紅血球凝集素蛋白就是一個例子:當它接觸到宿主細胞囊泡的酸性環境時,它的構象立刻發生變化,導致其獲得激活。[71]
[編輯] 相關疾病
�〞漪〝吤眸溺Y格控制以維持體內平衡,對於能夠影響一個關鍵�〞漸\能的任何基因缺陷(如突變導致活性變化,過量表達、過低表達或刪除突變)都可能導致遺傳性疾病發生。許多事實顯示,一種致命疾病的病因可以只是由於人體中的數千種�﹞云漱@種發生功能故障。
- 苯丙酮尿症:此種病症是典型的�′袺鰩f例之一。病因是苯丙胺酸羥化��(其功能是催化苯丙胺酸降解過程中的第一步)上一個胺基酸位點發生了突變,導致體內苯丙胺酸和相關產物的水平過高,如果沒有得到合適的治療,會進一步導致智能障礙。
- �v�扈f:該病是由於血紅素生物合成途徑中特定�〞��′〝妏L低(基因突變或其他原因導致),使得中間產物�v��的產生和排泄異常,在一定誘因(如陽光照射)下,可導致皮膚或其他組織器官發生病變。
- 當生殖細胞中編碼DNA修復相關�〞滌穧]發生突變,其結果會導致遺傳性癌症綜合病徵,如著色性干皮症。DNA修復�〞滲妘晷伬P人體喪失修復突變基因的能力。發生的突變不斷積累,最終使得患者有多種癌症發生。
[編輯] 命名規則
�○q常是根據其受質性質或其所催化的化學反應類型來命名(英文中,在單詞的最後要加上-ase的後綴),如乳糖��(lactase)、醇脫氫��(alcohol dehydrogenase)和DNA聚合��(DNA polymerase)。但這樣往往會導致具有相同功能的不同的�﹛]同工��)有相同的名字,而同工�’陬菑ㄕP的胺基酸序列並可以通過它們不同的最適pH和不同的反應動力學參數來區分。而且,一些�”膃釣潃茤峖h個類型催化活性,這種命名方式就會使得同一種�”膃酗ㄕP的名字。為了解決這些問題,國際生物化學與分子生物學聯盟發展出了�〞漕t統命名法:
EC編號規定每種�○ㄔ悒|個數字來表示,並在數字前冠以「EC」。其中,第一個數字是根據�‵P反應的性質來將�﹞j致分為六大類:
國際系統分類法除按上述六類將�”怞蜇s號外,還根據�〝珔吨う�化學鍵的特點和參加反應的基團的不同,將每一大類又進一步分類。編號中的第一個數字表示該�_搣韝誘j類中的哪一類;第二個數字表示該�_搣颻�一亞類;第三個數字表示亞-亞類;第四個數字是該�’b亞-亞類中的排序。
[編輯] 應用
�○Q用於化工等各類需要高度特異性催化情況的用途。但是,�○q常能夠催化的反應數量有限,而且它們在無機溶液中和高溫情況下缺乏穩定性。為了提高�〞瑰野峏吽A利用蛋白質工程通過合理設計或體外進化來造出具有新特點(例如耐高溫)的�﹞w經成為一個活躍的研究領域。[72][73]這類研究工作也有了成功的例子,一些能夠催化自然界中的�〝珛L法催化的反應的�﹞w經開始被設計出來。[74]
以上文章來自於維基百科,欲閱讀原文請點以下連結
http://zh.wikipedia.org/zh-tw/%E9%85%B5%E7%B4%A0
回上一頁
推到 Twitter!
推到 Plurk!
推到 Facebook!
|
|
|